Je hebt ontbeten, misschien nog een banaan gegeten, je schoenen aangetrokken en je gaat lopen. We zeggen dan gemakkelijk dat je lichaam energie haalt uit koolhydraten en vetten.
Maar je kuitspier kan geen boterham gebruiken om samen te trekken. Een spiervezel kan ook niet rechtstreeks op een vetmolecuul draaien.
Tussen de brandstof die we eten en de beweging van onze spieren zit een onmisbare tussenstap: ATP.
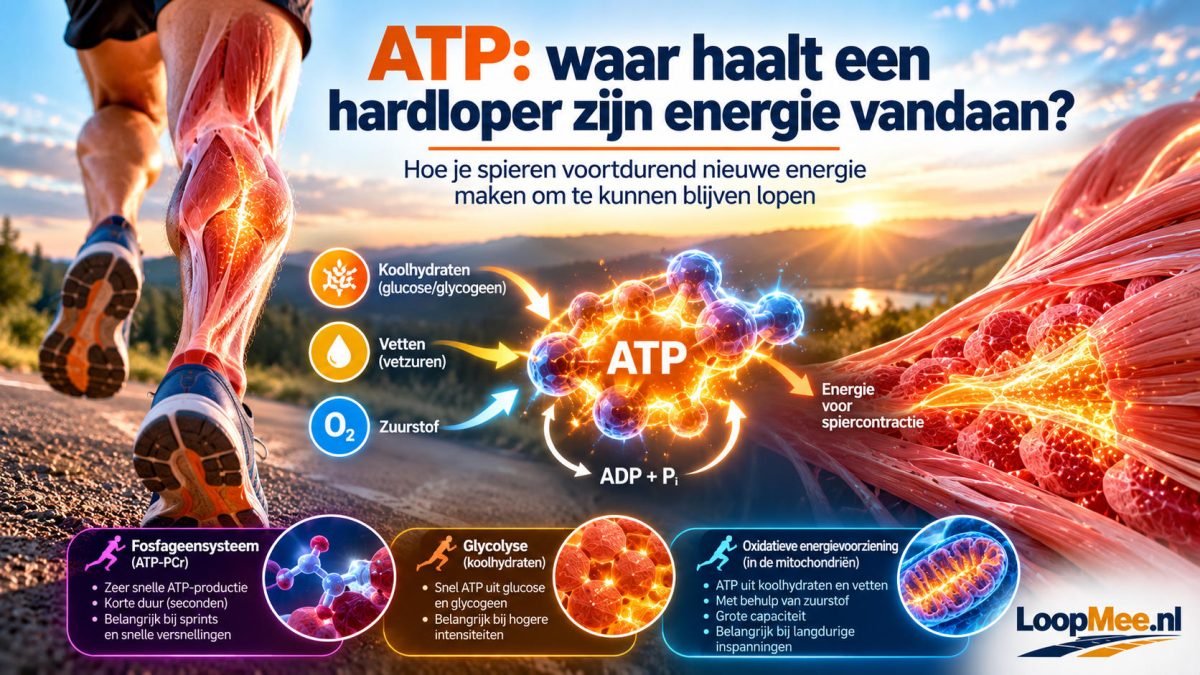
ATP staat voor adenosinetrifosfaat. Het is de direct bruikbare energiedrager van onze cellen. Iedere keer dat spieren kracht leveren om ons tijdens het hardlopen vooruit te bewegen, is ATP nodig.
En daar begint iets merkwaardigs. We hebben er maar een kleine direct beschikbare voorraad van.
ATP is de energievaluta van de spier
ATP kun je vergelijken met geld dat direct in je portemonnee zit. Koolhydraten en vetten zijn eerder de grotere voorraden op je bankrekening en spaarrekening. Ze vertegenwoordigen veel energie, maar die moet eerst beschikbaar worden gemaakt in een vorm waarmee de cel iets kan.
Een ATP-molecuul bestaat uit adenosine waaraan drie fosfaatgroepen zijn gekoppeld. Wanneer de buitenste fosfaatgroep wordt afgesplitst, ontstaat ADP (adenosinedifosfaat) en komt energie beschikbaar die de cel kan gebruiken, onder andere voor spiercontractie.
Een van die processen is spiercontractie.
In onze spiervezels schuiven eiwitstructuren langs elkaar om kracht te produceren. Voor dat proces is ATP noodzakelijk. Ook andere processen die tijdens en na spierarbeid plaatsvinden, kosten energie.
Zonder een voortdurende aanvoer van ATP houdt spierarbeid dus op.
Maar we nemen nauwelijks ATP mee
Hier zit het probleem.
Spieren slaan maar een beperkte hoeveelheid ATP direct op. Die voorraad is veel te klein om een hardloper minuten of uren van energie te voorzien.
Daarom moet ATP tijdens het lopen voortdurend opnieuw worden gevormd.
Dat gebeurt razendsnel. Zodra de vraag naar ATP toeneemt, reageren verschillende metabole processen om de afgebroken ATP-moleculen weer aan te vullen.
Het interessante is dus niet zozeer hoeveel ATP we hebben, maar hoe snel en hoe lang we ATP opnieuw kunnen maken.
Drie manieren om ATP opnieuw te maken
In de inspanningsfysiologie wordt meestal onderscheid gemaakt tussen drie belangrijke routes waarmee spieren ATP kunnen regenereren:
- het fosfageensysteem, vooral via fosfocreatine;
- de glycolytische energievoorziening;
- de oxidatieve energievoorziening in de mitochondriën.
Dat klinkt alsof het lichaam drie motoren bezit en afhankelijk van de snelheid een andere motor start.
Zo werkt het niet.
Alle drie dragen bij aan de energievoorziening. Wat verandert, is hoeveel iedere route op een bepaald moment bijdraagt. Vooral de intensiteit en duur van de inspanning hebben daar grote invloed op.
Fosfocreatine: onmiddellijk beschikbaar
Wanneer je plotseling hard versnelt, hoeft je lichaam niet eerst rustig een ingewikkeld productieproces op te starten.
In de spier bevindt zich fosfocreatine, vaak afgekort tot PCr. De fosfaatgroep daarvan kan snel worden gebruikt om ADP weer om te zetten in ATP.
Dat systeem kan ATP zeer snel regenereren en is daardoor bijzonder belangrijk bij zeer korte, explosieve inspanningen: een sprint vanaf de start, een sprong of een plotselinge versnelling.
Maar de capaciteit ervan is beperkt. Bij een maximale inspanning neemt de beschikbare hoeveelheid fosfocreatine snel af.
Voor een honderdmetersprinter is dat systeem daarom bijzonder belangrijk. Maar ook een marathonloper gebruikt het. Iedere plotselinge versnelling, scherpe heuvel of eindsprint verandert immers de vraag naar ATP.
Glycolyse: snel energie uit koolhydraten
Een tweede route is de glycolyse.
Daarbij wordt glucose afgebroken. Die glucose kan uit het bloed komen of afkomstig zijn uit glycogeen, de opgeslagen vorm van koolhydraten in onder andere onze spieren.
Tijdens de glycolyse kan ATP relatief snel worden gevormd.
Bij toenemende inspanningsintensiteit wordt de bijdrage van koolhydraatmetabolisme steeds belangrijker. Koolhydraten kunnen bovendien zowel via processen buiten de mitochondriën als via verdere oxidatie in de mitochondriën bijdragen aan ATP-productie.
Dat laatste is belangrijk, want de tegenstelling koolhydraten zijn anaeroob en vetten zijn aeroob klopt niet. Koolhydraten spelen juist ook een grote rol in de aerobe energievoorziening.
En waar komt lactaat dan vandaan?
Bij de afbraak van glucose via de glycolyse ontstaat uiteindelijk pyruvaat en wordt lactaat gevormd. Lange tijd werd een stijgende lactaatconcentratie vooral gekoppeld aan een tekort aan zuurstof.
Dat beeld is achterhaald.
Lactaat wordt ook geproduceerd wanneer er voldoende zuurstof beschikbaar is. Het is bovendien niet simpelweg afval. Lactaat kan worden vervoerd en elders weer worden gebruikt als brandstof voor oxidatieve energieproductie.
De bekende uitdrukking dat je bij zware inspanning ineens ‘zonder zuurstof’ gaat lopen, geeft daarom een verkeerd beeld van wat er werkelijk gebeurt.
De aerobe energieproductie stopt niet wanneer de intensiteit hoog wordt. Integendeel: ook tijdens zeer intensieve inspanning kan de oxidatieve energievoorziening een aanzienlijke bijdrage leveren.
De mitochondriën komen weer terug
Voor langdurige ATP-productie zijn de mitochondriën van groot belang. Die kwamen we in het eerste artikel van deze reeks al tegen.
In de mitochondriën vindt oxidatieve fosforylering plaats. Daarbij wordt energie uit onder andere koolhydraten en vetzuren gebruikt om ATP te produceren. Hiervoor speelt zuurstof een essentiële rol.
Deze route kan niet zo explosief ATP leveren als het fosfageensysteem, maar beschikt over een veel grotere capaciteit.
Dat maakt de oxidatieve energievoorziening bijzonder belangrijk voor een duursporter.
Wie een uur hardloopt, kan dat onmogelijk volhouden op de kleine ATP-voorraad waarmee hij vertrok. De ATP die tijdens dat uur wordt gebruikt, wordt steeds opnieuw gevormd.
Koolhydraten of vetten?
Beide.
Dat eenvoudige antwoord voorkomt meteen een van de hardnekkigste misverstanden over energievoorziening tijdens het hardlopen.
Bij lage en matige intensiteiten kunnen zowel vetten als koolhydraten een belangrijke bijdrage leveren aan de energieproductie. Naarmate de intensiteit stijgt, verschuift het gebruik doorgaans steeds verder richting koolhydraten.
Vet levert per gram veel energie en onze totale vetvoorraad is groot. Maar energie uit vet kan niet met dezelfde snelheid beschikbaar worden gemaakt als nodig is bij zeer hoge inspanningsintensiteiten.
Koolhydraten zijn daarom bij hogere intensiteiten een bijzonder belangrijke brandstof.
Begint vetverbranding pas na twintig minuten?
Nee.
Je lichaam wacht niet twintig minuten, kijkt vervolgens op een stopwatch en besluit dan eindelijk het vetmagazijn open te zetten.
Vetoxidatie vindt al plaats vanaf het begin van een inspanning. Ook koolhydraten worden vanaf het begin gebruikt.
Wat gedurende een training verandert, is de relatieve en absolute bijdrage van verschillende brandstoffen. Intensiteit speelt daarbij een belangrijke rol, maar ook trainingsstatus, voeding, duur van de inspanning en individuele eigenschappen hebben invloed.
Bij oplopende inspanningsintensiteit neemt de absolute vetoxidatie aanvankelijk vaak toe, bereikt ergens bij een matige intensiteit een maximum en neemt bij hogere intensiteiten weer af. Tegelijkertijd wordt de bijdrage van koolhydraten steeds groter.
Er bestaat dus geen universele minuut waarop een hardloper plotseling overschakelt van suiker naar vet.
Aeroob en anaeroob zijn geen aan-uitknoppen
Ook de termen aeroob en anaeroob kunnen verwarrend zijn.
Aeroob verwijst naar energieproductie waarbij oxidatieve processen en uiteindelijk zuurstof een rol spelen. Met anaerobe ATP-productie bedoelen we routes waarbij ATP kan worden gevormd zonder dat zuurstof rechtstreeks in die betreffende reacties wordt gebruikt.
Maar tijdens het hardlopen bestaan die processen naast elkaar.
Zelfs tijdens een korte, maximale inspanning levert het aerobe metabolisme al een bijdrage. En tijdens een rustige duurloop vinden ook processen plaats die we onder de anaerobe energievoorziening rangschikken.
Het is daarom beter om te denken in verhoudingen dan in schakelaars.
Wat gebeurt er als je harder gaat lopen?
Stel dat je rustig aan het dribbelen bent en vervolgens versnelt naar wedstrijdtempo.
Je spieren moeten meer kracht leveren en vaker samentrekken. De vraag naar ATP per seconde stijgt.
Om daaraan te voldoen verandert de bijdrage van de verschillende routes. Koolhydraatverbruik neemt toe, de glycolytische flux wordt groter en de totale oxidatieve energieproductie stijgt eveneens zolang het lichaam daartoe in staat is.
Versnel je nog verder naar een bijna maximale sprint, dan wordt de snelle ATP-productie uit fosfocreatine en glycolytische processen relatief veel belangrijker.
Maar de mitochondriën zetten niet ineens het licht uit.
Waarom kan een goed getrainde hardloper langer hard lopen?
Training verandert verschillende onderdelen van dit energiesysteem.
Duurtraining kan onder andere de mitochondriale capaciteit vergroten. Ook de haarvatvoorziening, het gebruik en transport van brandstoffen en verschillende enzymatische processen kunnen zich aanpassen.
Daardoor kan een getrainde spier bij een bepaalde absolute snelheid anders omgaan met zijn energievoorziening dan een ongetrainde spier.
Dat is een van de redenen waarom hetzelfde tempo voor de ene hardloper een rustige duurloop kan zijn en voor de andere bijna wedstrijdtempo.
Het tempo op zichzelf vertelt dus niet welke energiesystemen iemand gebruikt of in welke verhouding dat gebeurt.
En wat betekent dit voor training?
Dat verschillende trainingsintensiteiten verschillende eisen stellen aan de ATP-productie.
Een rustige duurloop vraagt vooral om een langdurig vol te houden energievoorziening. Snellere intervallen verhogen de benodigde ATP-productie per tijdseenheid sterk. Korte versnellingen doen weer relatief veel beroep op zeer snelle energievoorziening.
Daarmee krijgen verschillende trainingen ook verschillende metabole kenmerken.
Maar we moeten oppassen daar een te strak schema van te maken. Een rustige duurloop is niet uitsluitend ‘aeroob’, een interval is niet uitsluitend ‘anaeroob’ en een sprint gebruikt niet uitsluitend fosfocreatine.
Het lichaam werkt niet volgens de hoofdstukindeling van een fysiologieboek.
Uiteindelijk draait alles om ATP
Koolhydraten zijn geen spierenergie. Vet is geen spierenergie. Zuurstof is evenmin energie.
Het zijn onderdelen en brandstoffen van processen waarmee onze cellen de ATP-voorraad voortdurend kunnen aanvullen.
Dat kleine molecuul vormt uiteindelijk de directe verbinding tussen wat we eten, wat onze stofwisseling ermee doet en de kracht waarmee onze spieren ons over de weg, atletiekbaan of bospad voortbewegen.
En misschien is dat wel het bijzonderste: tijdens een lange duurloop gebruiken en regenereren onze spieren voortdurend enorme hoeveelheden ATP, terwijl de daadwerkelijk aanwezige voorraad op ieder afzonderlijk moment klein blijft.
Een hardloper loopt dus niet uren op een volle energietank.
Hij loopt uren doordat zijn lichaam die energievoorraad voortdurend opnieuw aanvult.
Voor dit artikel is gebruikgemaakt van wetenschappelijke overzichtsliteratuur over ATP-productie in skeletspieren, de samenwerking tussen de verschillende metabole routes tijdens inspanning, het gebruik van koolhydraten en vetten en de moderne inzichten in lactaatmetabolisme.
Hargreaves M, Spriet LL. Skeletal muscle energy metabolism during exercise. Nature Metabolism (2020).
Een uitgebreid overzicht van ATP-resynthese, koolhydraat- en vetmetabolisme en de invloed van intensiteit en duur van inspanning.
https://www.nature.com/articles/s42255-020-0251-4
Baker JS, McCormick MC, Robergs RA. Interaction among Skeletal Muscle Metabolic Energy Systems during Intense Exercise.
Over de gelijktijdige en gecoördineerde bijdrage van het fosfageensysteem, glycolyse en mitochondriale energieproductie aan ATP-regeneratie.
https://pmc.ncbi.nlm.nih.gov/articles/PMC3005844/
Brooks GA. Lactate as a fulcrum of metabolism.
Over de moderne kijk op lactaat: niet uitsluitend een gevolg van zuurstoftekort of een afvalproduct, maar een stof die ook onder aerobe omstandigheden wordt gevormd en als brandstof en signaalstof kan functioneren.
https://pmc.ncbi.nlm.nih.gov/articles/PMC7284908/
Purdom T, Kravitz L, Dokladny K, Mermier C. Understanding the factors that effect maximal fat oxidation.
Over het gebruik van vetzuren tijdens inspanning en de invloed van onder andere trainingsintensiteit, trainingsstatus, voeding en inspanningsduur.
https://pmc.ncbi.nlm.nih.gov/articles/PMC5766985/
Kiens B. Regulation and limitations to fatty acid oxidation during exercise.
Over de regulering van vetoxidatie en de afname daarvan wanneer de inspanningsintensiteit sterk toeneemt.
https://pmc.ncbi.nlm.nih.gov/articles/PMC3381814/